Какова современная биология мировой классической популярной науки?
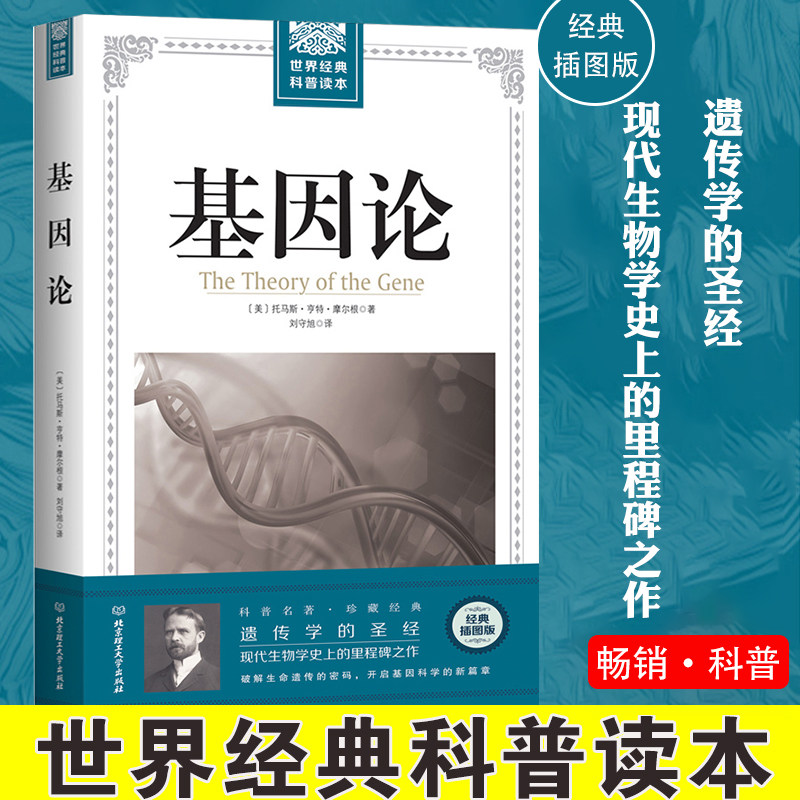

Вес товара: ~0.7 кг. Указан усредненный вес, который может отличаться от фактического. Не включен в цену, оплачивается при получении.
Описание товара


 Основная информация
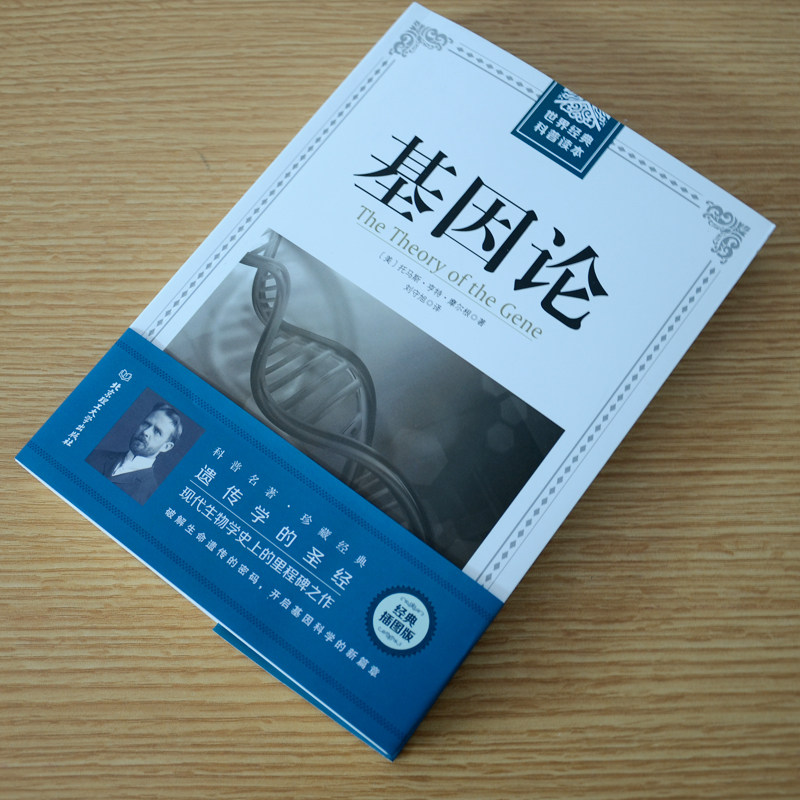
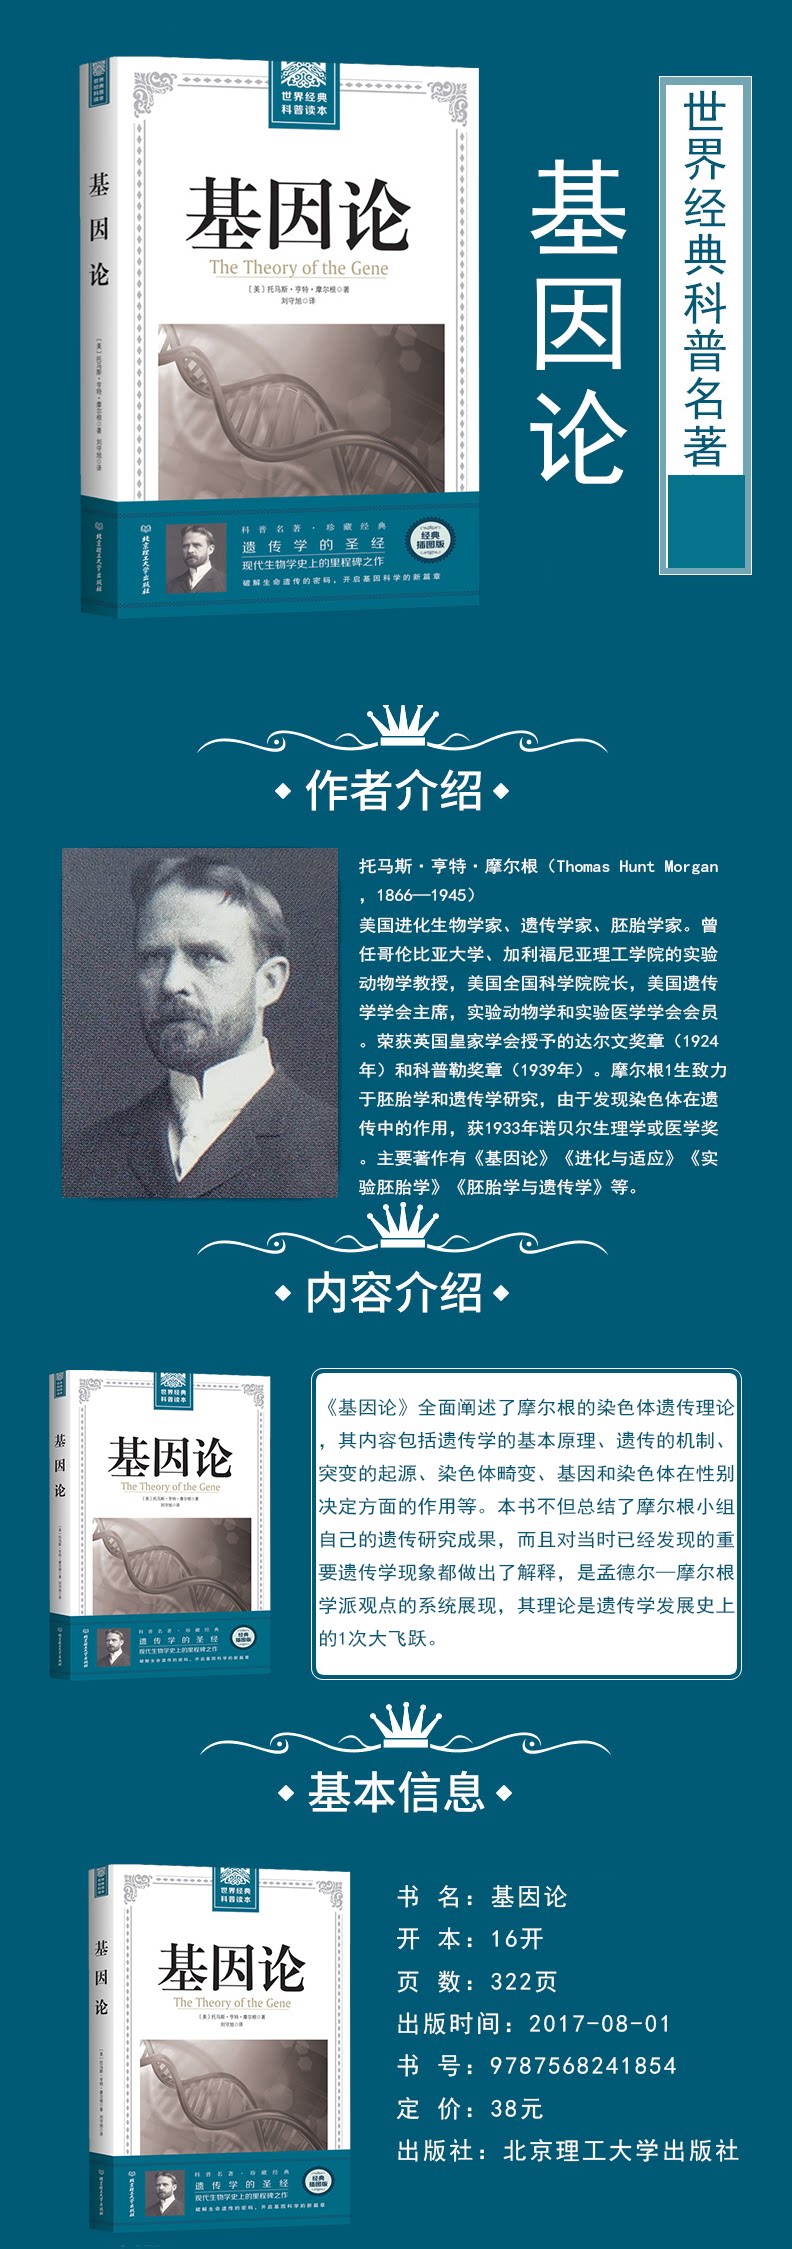
Название книги: World Classic Popular Science Reader——
Press: Пекинский институт технологического института
ISBN: 9787568241854
Упаковка: Тихий океан
Название серии: Научно-популярные читатели мировой классики
Формат: 16
Время публикации: 2017-08-01
Бумага: легкая бумага
Количество страниц: 322
Слова: 230000
краткое введение
«Теория генов» всесторонне объясняет теорию хромосомного наследования Моргана, включающую основные принципы генетики, механизм наследования, происхождение мутаций, хромосомных аберраций, а также роль генов и хромосом в определении пола.Эта книга не только суммирует результаты генетических исследований группы Моргана, но и объясняет важные генетические явления, открытые в то время. Это Мендель&- Систематическое изложение взглядов школы Моргана и ее теории явилось большим скачком вперед в истории развития генетики.
об авторе
Томас&Миддот; Охотник&миддот; Томас Хант Морган (1866 г.)— 1945)
Американский биолог-эволюционист, генетик и эмбриолог.Он был профессором экспериментальной зоологии в Колумбийском университете и Калифорнийском технологическом институте, президентом Национальной академии наук, президентом Американского генетического общества и членом Общества экспериментальной зоологии и экспериментальной медицины. Обладатель медали Дарвина (1924 г.) и медали Коплера (1939 г.), присуждаемых Королевским обществом. Морган посвятил свою жизнь исследованиям в области эмбриологии и генетики. Он получил Нобелевскую премию по физиологии и медицине 1933 года за открытие роли хромосом в наследственности. Среди его основных работ — «Теория генов», «Эволюция и адаптация», «Экспериментальная эмбриология», «Эмбриология и генетика» и др.
Лю Шоусю
Магистр Цзилиньского университета, в настоящее время преподаватель экспериментальной средней школы провинции Цзилинь, соредактор книг «Стиль великой державы: дипломатическая история Китайской Народной Республики» и «Страны с формирующимся рынком: интеграция в систему или вызов модели». Многие из его переведенных работ включены в «Исследования по теории британской школы и истории международных отношений» и «Китай и мир (первая серия)».
Оглавление
Глава 1? Основные принципы генетики 001
Глава 2? Генетическая теория частиц 021
Глава 3? Генетический механизм 026
Глава 4? Хромосомы и гены 037
Глава 5? Происхождение мутационных признаков 048
Глава 6? Вызвано ли возникновение мутантных рецессивных генов потерей генов? 059
Глава 7? Расположение генов у близкородственных видов 078
Глава 8? Четырехместный тип 087
Глава 9. Триплоидия 108.
Глава 10? Гаплоид 115
Глава 11? Полиплоидия 124
Глава 12? Анеуплоидия 143
Глава 13? Гибридизация между видами и изменения в хромосоме № 159
Глава 14? Гендер и гены 167
Глава 15? Другие методы определения пола, включающие половые хромосомы 184
Глава 16? Нейтральный 211
Глава 17? Сексуальное обращение 219
Глава 18? Генная стабильность 244
Глава 19? Вывод 259
Ссылки 268
Замечательная книга
Современная генетическая теория основана на данных, полученных в результате скрещивания двух особей с одним или несколькими разными признаками. Эта теория в основном изучает распределение генетических единиц между поколениями среди людей. Подобно тому, как химики постулируют существование невидимых атомов, а физики постулируют существование невидимых электронов, так и генетики постулируют существование невидимых элементарных элементов и называют их генами. Ключом к этой аналогии является то, что они оба делают выводы на основе количественных данных. Предпосылка этих теорий заключается в том, что они могут помочь нам сделать определенные прогнозы на основе количественных данных. В этом смысле отличие теории генов от предшествующих биологических теорий состоит в том, что хотя предыдущие биологические теории также предполагали существование невидимых основных единиц, они считали свойства этих единиц произвольными, тогда как теория генов уточняла свойства генетических единиц, основываясь исключительно на количественных данных.
Два закона Менделя
Вклад Менделя заключается в открытии двух основных законов, которые являются краеугольными камнями современной генетической теории. На протяжении всего ХХ века постоянные усилия других ученых вели нас дальше в этом направлении и сделали возможными сложные теоретические разработки, основанные на более широком фундаменте. Для иллюстрации выводов Менделя можно использовать некоторые распространенные примеры.
Мендель скрестил высокий сорт съедобного гороха с низкорослым сортом, и все полученные гибриды (потомки) показали характеристики высокого растения (рис. 1-1). После самооплодотворения потомства полученные внуки показали две характеристики: высокие растения и низкие растения с соотношением высоких и карликовых растений 3:1.Если зародышевые клетки высокорослого сорта содержат генетический материал, способствующий развитию высокого признака, а зародышевые клетки низкорослого сорта несут генетический материал, способствующий появлению признака карликовости, гибрид будет содержать как высокорослый, так и карликовый генетический материал.Тогда гибрид высокого растения означает, что генетический материал высокого растения доминирует над генетическим материалом низкого растения, а генетический материал высокого растения является доминантным.Соответственно, генетический материал низкорослого растения рецессивен.
Мендель указывал, что соотношение роста и роста потомства 3:1 можно объяснить простой гипотезой.Если генетический материал высокого растения и генетический материал низкорослого растения (в гибриде они сосуществуют) разделены, когда яйца и пыльцевые зерна приближаются к созреванию, то половина яиц будет содержать генетический материал высокого растения, а другая половина яиц будет содержать генетический материал низкорослого растения (рис. 1-1). То же самое справедливо и для пыльцевых зерен.Если любое яйцо и любое пыльцевое зерно встречаются и оплодотворяются с одинаковой вероятностью, в среднем будет получено соотношение распределения по высоте 3:1. То есть, если удобрить высокорослым растением, то получится высокое растение; если высокое растение удобрить низкорослым, получится высокое растение; если низкорослое растение удобрить высоким, получится высокое растение;только при удобрении низкорослым растением получится низкорослое растение.
Мендель провел простую проверку этой гипотезы путем обратного скрещивания гибрида с рецессивным типом. Если зародышевые клетки гибрида имеют два типа — высокий и короткий, то и его потомство должно иметь два типа — высокий и короткий, по половине каждого типа (рис. 1-2). Результаты испытаний подтвердили гипотезу.
Точно так же наследование цвета глаз человека можно использовать для объяснения взаимосвязи между высоким и низким горошком.Если соединить голубоглазых с голубыми глазами, потомство можно получить только голубоглазое; если соединить карие глаза с карими глазами, то можно получить кареглазое потомство только при условии, что предки обоих будут иметь карие глаза.Если голубоглазую особь скрестить с чистокровным кареглазым, потомство будет кареглазым (рис. 1-3). Если спарить двух кареглазых особей с таким родством, то соотношение их потомков с карими глазами к голубым глазам будет 3:1.
Если гибридная кареглазая особь (потомство каре-голубой) находится в браке с голубоглазой особью, то вероятность того, что потомство окажется кареглазым и голубоглазым, равна половине (рис. 1-4).
Некоторые примеры гибридизации могут обеспечить более важную поддержку первого закона Менделя, например, скрещивание пурпурного жасмина с красными цветками и жасмина с белыми цветками. Гибрид имеет розовые цветки (рис. 1-5). Если эти гибриды с розовыми цветками будут самооплодотворены, у некоторых внуков будут красные цветы, как у их предков, у некоторых будут розовые цветы, как у гибридов, а у некоторых будут белые цветы, как у других предков. Соотношение этих трех составляет 1:2:1.Когда красные зародышевые клетки объединяются с красными зародышевыми клетками, восстанавливается один из исходных родительских генов окраски цветка; когда белые клетки объединяются с белыми клетками, цвет другого родительского цветка восстанавливается; а когда красный и белый или белый и красный объединятся, появятся гибриды.Соотношение цветных растений к белым во втором поколении (внуках) составляет 3:1.
Следует отметить два момента.Мы ожидаем, что внуки с красными и белыми цветками могут дать чистое потомство, поскольку они содержат элементы красного цветка или элементы белого цветка соответственно, но внуки с розовым цветком не должны давать розовое потомство, потому что они содержат как элементы красного цветка, так и элементы белого цветка (рис. 1-6), что то же самое, что и гибридное поколение.Эти выводы подтвердились, когда мы исследовали растения.
Пока существующие результаты могут говорить нам лишь о том, что генетический материал обоих родителей в гибридных зародышевых клетках разделен. Основываясь только на этих данных, эти результаты можно интерпретировать как свидетельство того, что растения с красными и белыми цветками генетически интегрированы.
Еще один эксперимент проливает дополнительный свет на этот вопрос.Мендель скрестил горох с желтыми круглыми семенами и горох с зелеными морщинистыми семенами. Из других примеров гибридизации мы знаем, что желтые семена и зеленые семена представляют собой пару относительных признаков, а их гибридные внуки имеют соотношение 3:1. В то же время круглые семена и морщинистые семена представляют собой еще одну пару относительных признаков.
В этом эксперименте все потомство было желто-круглым (рис. 1-7). В результате самоскрещивания в потомстве образовались четыре типа особей: желто-круглые, желто-морщинистые, зелено-круглые и зелено-морщинистые в соотношении 9:3:3:1.
Мендель указывал, что если разделение желтых и зеленых элементов и разделение круглых и морщинистых элементов независимы друг от друга, то приведенные здесь данные можно объяснить, т. е. гибриды будут генетически производить четыре типа половых клеток: желтые круглые, желтые морщинистые, зеленые круглые и зеленые морщинистые (рис. 1-8).
Если эти четыре типа яиц и пыльцевых зерен оплодотворить случайным образом, получится 16 возможных комбинаций. Желтый – доминантный, зеленый – рецессивный, округлый – доминантный, морщины – рецессивный. Эти 16 комбинаций будут разделены на четыре категории в зависимости от соотношения 9:3:3:1.
Результаты экспериментов показывают, что нельзя предполагать, что у гибридов репродуктивный материал родителей раздельный.В некоторых случаях желтые и круглые символы при участии в крестах находятся вместе, но после крестов разделяются.То же самое касается зеленого и плиссированного.
Мендель далее указывал, что при скрещивании трех или даже четырех пар признаков элементы признака соединяются друг с другом без вмешательства в зародышевые клетки гибрида.
Этот вывод, по-видимому, остается справедливым независимо от того, сколько пар признаков участвует в данном скрещивании.Это означает, что в репродуктивном материале столько пар взаимно независимых элементов, сколько возможных комбинаций признаков.Дальнейшие исследования показывают, что второй закон свободного соединения Менделя имеет более строгие ограничения в своем применении, поскольку многие пары элементов не могут свободно соединяться, а некоторые фиксированные элементы, агрегирующиеся вместе при участии в гибридизации, агрегируются и в гибридном потомстве.Это явление называется&Ldquo; цепь”.
Цепь
Статьи Менделя были заново открыты в 1900 году.Четыре года спустя Бейтсон и Паннетт сообщили, что их наблюдения не дали числовых результатов, ожидаемых, когда две пары независимых признаков свободно соединяются в пары.Например, когда растение душистого горошка с фиолетовыми цветками и удлиненными пыльцевыми зернами скрещивается с растением душистого горошка с красными цветками и круглыми пыльцевыми зернами, два типа признаков объединяются в гибриде, но встречаются совместно у гибридного потомства чаще, чем можно было бы ожидать, если бы пурпурная и круглая пыльца были свободно спарены (рис. 1-9).Они предполагают, что такой результат происходит потому, что фиолетовые, длинные, красные и круглые черты их родителей отталкивают друг друга при объединении.Это отношение теперь называется&Ldquo; цепь”, относится к тому, что когда определенные признаки объединяются при скрещивании, они имеют тенденцию оставаться объединенными в потомстве, или, с другой стороны, сочетание определенных пар признаков не является случайным.
Что касается цепочки, то распространение репродуктивного материала представляется ограниченным.Например, у Drosophila melanogaster известно около 400 новых типов вариантов, но эти типы можно разделить только на четыре группы сцепления.
Среди четырех упомянутых выше групп признаков у дрозофилы существует связь сцепления между наследованием и полом одной группы признаков, которую мы выражаем как“Секс-связь&рдкво;.У дрозофилы имеется около 150 сцепленных с полом мутантных признаков, часть из которых отражается в вариациях цвета глаз, часть связана с формой или размером глаз или отражается в закономерности распределения маленьких глаз.Некоторые другие черты связаны с цветом тела, некоторые с формой крыльев, некоторые с расположением жилок на перьях, а некоторые с шипами и пухом, покрывающим тело.
Вторая группа черт имеет около 120 связанных черт, включая изменения во всех частях тела, но ни одна из них не оказывает такого же эффекта, как первая группа.
Третья группа признаков насчитывает около 130 признаков, охватывающих также все части тела.Эти черты отличаются от черт двух вышеупомянутых групп черт.
Четвертая группа признаков меньше, всего три признака: один связан с размером глаз, что в крайних случаях может привести к полному исчезновению глаз; второй предполагает положение крыльев; и третий связан с длиной пуха.
Следующий пример иллюстрирует, как наследуются связанные признаки.Если самца плодовой мухи с четырьмя связанными признаками (принадлежащими к группе вторичных признаков), включая черное тело, фиолетовые глаза, следы крыльев и пятна на основании крыльев (рис. 1-10), скрестить с самкой плодовой мухи дикого типа с нормальными относительными признаками, такими как серое тело, красные глаза, длинные крылья и отсутствие пятен, потомство будет диким типом.Один из потомков мужского пола был скрещен с самкой с четырьмя рецессивными признаками (черное тело мухи, фиолетовые глаза, следы крыльев и пятна), и потомство имело только два типа: половина имела четыре рецессивных признака, как один предок, а другая половина была дикого типа, как другой предок.
В скрещивании участвуют два набора противоположных (или аллельно) связанных генов. Когда сперматозоиды мужского гибрида созревают, один набор сцепленных генов входит в половину сперматозоидов, а другой набор аллелей, противоположных дикому типу, входит в другую половину сперматозоидов дикого типа.Присутствие двух вышеупомянутых сперматозоидов можно обнаружить при скрещивании гибридного потомства мужского пола с чистопородной самкой с четырьмя рецессивными генами.Все зрелые яйца рецессивной самки мухи содержат набор из четырех рецессивных генов. Если любую яйцеклетку соединить со спермой, несущей набор доминантных генов дикого типа, получится плодовая мушка дикого типа; если любую яйцеклетку соединить со сперматозоидом, несущим четыре рецессивных гена (таких же, как использованные здесь гены самки мухи), то получится плодовая мушка с черным телом, фиолетовыми глазами, следами крыльев и пятнами.Это два способа создания особей-внуков.
Обмен
Гены внутри группы сцепления не всегда полностью сцеплены, как в только что упомянутом примере.Фактически, некоторые рецессивные признаки одной серии могут обмениваться признаками дикого типа другой серии у потомков женского пола того же скрещивания.Однако, поскольку эти черты чаще остаются связанными, чем обмениваются ими, о них все же можно сказать, что они связаны.Такой обмен взаимодействиями между группами связей называется“ обмен&рдкво;.Это означает, что большое количество генов может подвергаться регулярному обмену между двумя противоположными сцепленными сериями.Понимание этого процесса является ключом к прояснению многих вопросов, которые будут объяснены далее, поэтому вот несколько примеров обмена мнениями для иллюстрации.
Когда самец плодовой мухи с рецессивными мутантными признаками желтых крыльев и белыми глазами спаривается с самкой дикого типа с серыми крыльями и красными глазами, потомство как мужского, так и женского пола будет иметь серые крылья и красные глаза (рис. 1-11).Если потомство женского пола скрестить с самцом с рецессивными признаками желтых крыльев и белых глаз, родятся четыре типа внуков.Два типа похожи на предков: с желтыми крыльями и белыми глазами или серыми крыльями и красными глазами. На эти два типа приходится в общей сложности 99% внуков.В процессе гибридизации скорость совместного появления признаков, совместно участвующих в гибридизации, у внуков выше, чем предсказывает второй закон Менделя (закон свободных ассоциаций).Кроме того, во втором поколении скрещивания получаются два других типа плодовых мушек (рис. 1-11): у одного типа желтые крылья и красные глаза, а у другого типа серые крылья и белые глаза.В общей сложности они составляют 1% гибридных внуков. это“Тип обмена” представляет собой взаимный обмен между двумя группами связей.
Подобные эксперименты можно проводить, комбинируя одни и те же признаки разными способами.Если самец с желтыми крыльями и красными глазами спаривается с самкой с серыми крыльями и белыми глазами, у потомства самки будут серые крылья и красные глаза (рис. 1-12).Если скрестить потомство самки с мухой-самцом с двумя рецессивными мутантными признаками, желтыми крыльями и белыми глазами, получатся четыре типа плодовых мушек.Два из них похожи на своих бабушек и дедушек и присутствуют у 99% внуков.Два других — это новые комбинации, то есть типы обмена: один — желтые крылья и белые глаза, другой — серые крылья и красные глаза. Вместе они составляют 1% внуков.
Эти результаты показывают, что скорость обмена между двумя признаками одинакова независимо от того, как они сочетаются при скрещивании.Если при скрещивании сочетаются два рецессивных признака, они также будут иметь тенденцию проявляться совместно у гибридного потомства.Эти отношения Бейтсон и Паннетт называют“Соединение&рдкво;.Если от каждого родителя происходят два рецессивных признака, и у гибридного потомства они имеют тенденцию проявляться раздельно (соответственно сочетаясь с доминантными признаками, первоначально сочетавшимися при скрещивании), такое родство называется“Отталкивать друг друга&рдкво;.Но в случае с двумя только что проведенными экспериментами по гибридизации эти отношения представляют собой не два разных явления, а разные проявления одной и той же ситуации.Другими словами, два связанных признака, участвующих в скрещивании, имеют тенденцию в конечном итоге проявляться совместно, независимо от того, являются ли они доминантными или рецессивными.
Другие черты дают разные проценты обмена.Например, если самца мухи с двумя мутировавшими рецессивными признаками: белыми глазами и тонкими крыльями (рис. 1-13) скрестить с плодовой мухой дикого типа с красными глазами и длинными крыльями, у потомства будут длинные крылья и красные глаза.Если потомство самки спаривается с белоглазым тонкокрылым самцом, у внуков будет четыре типа.На два типа бабушек и дедушек приходилось 67% внуков, а на два типа обмена — 33% внуков.
Следующий эксперимент имеет более высокий обменный курс.Белоглазые, перекрестношерстные самцы мух спариваются с самками дикого типа (рис. 1-14), и их потомство будет красноглазым и прямошерстным.Если потомство самки скрестить с белоглазым или раздвоенным самцом, получится четыре индивидуальных типа.Среди внуков 60% относятся к дедушкино-бабушкиному типу и 40% — к обменному типу.
Исследование бирж показывает, что все обмены происходят в 50% случаев.Если обмен происходит в 50% случаев, числовой результат такой же, как если бы произошла свободная комбинация.Даже если эти признаки находятся в одной группе сцепления, связи сцепления не будет.Однако взаимосвязь между двумя чертами одной и той же группы черт может быть обозначена их соответствующими общими связями с третьими чертами в той же группе.Если удастся найти обменный курс более 50%, то вероятность обменной комбинации будет больше, чем у прародительского типа, и возникнет цепочка противоположной ситуации.
На самом деле вероятность обмена среди самок мух всегда меньше 50%, поскольку существует еще один вид, называемый“Двойной обмен&рдкво; явление цепочки.Двойной кроссовер означает, что взаимный обмен двух пар генов происходит дважды при скрещивании.Мы наблюдаем уменьшение количества обменов, поскольку второй обмен нивелирует эффект одного обмена.Мы объясним это позже.